
Kinetyka aktywacji receptorów GLP-1 i GIP w komórkowych modelach metabolicznych
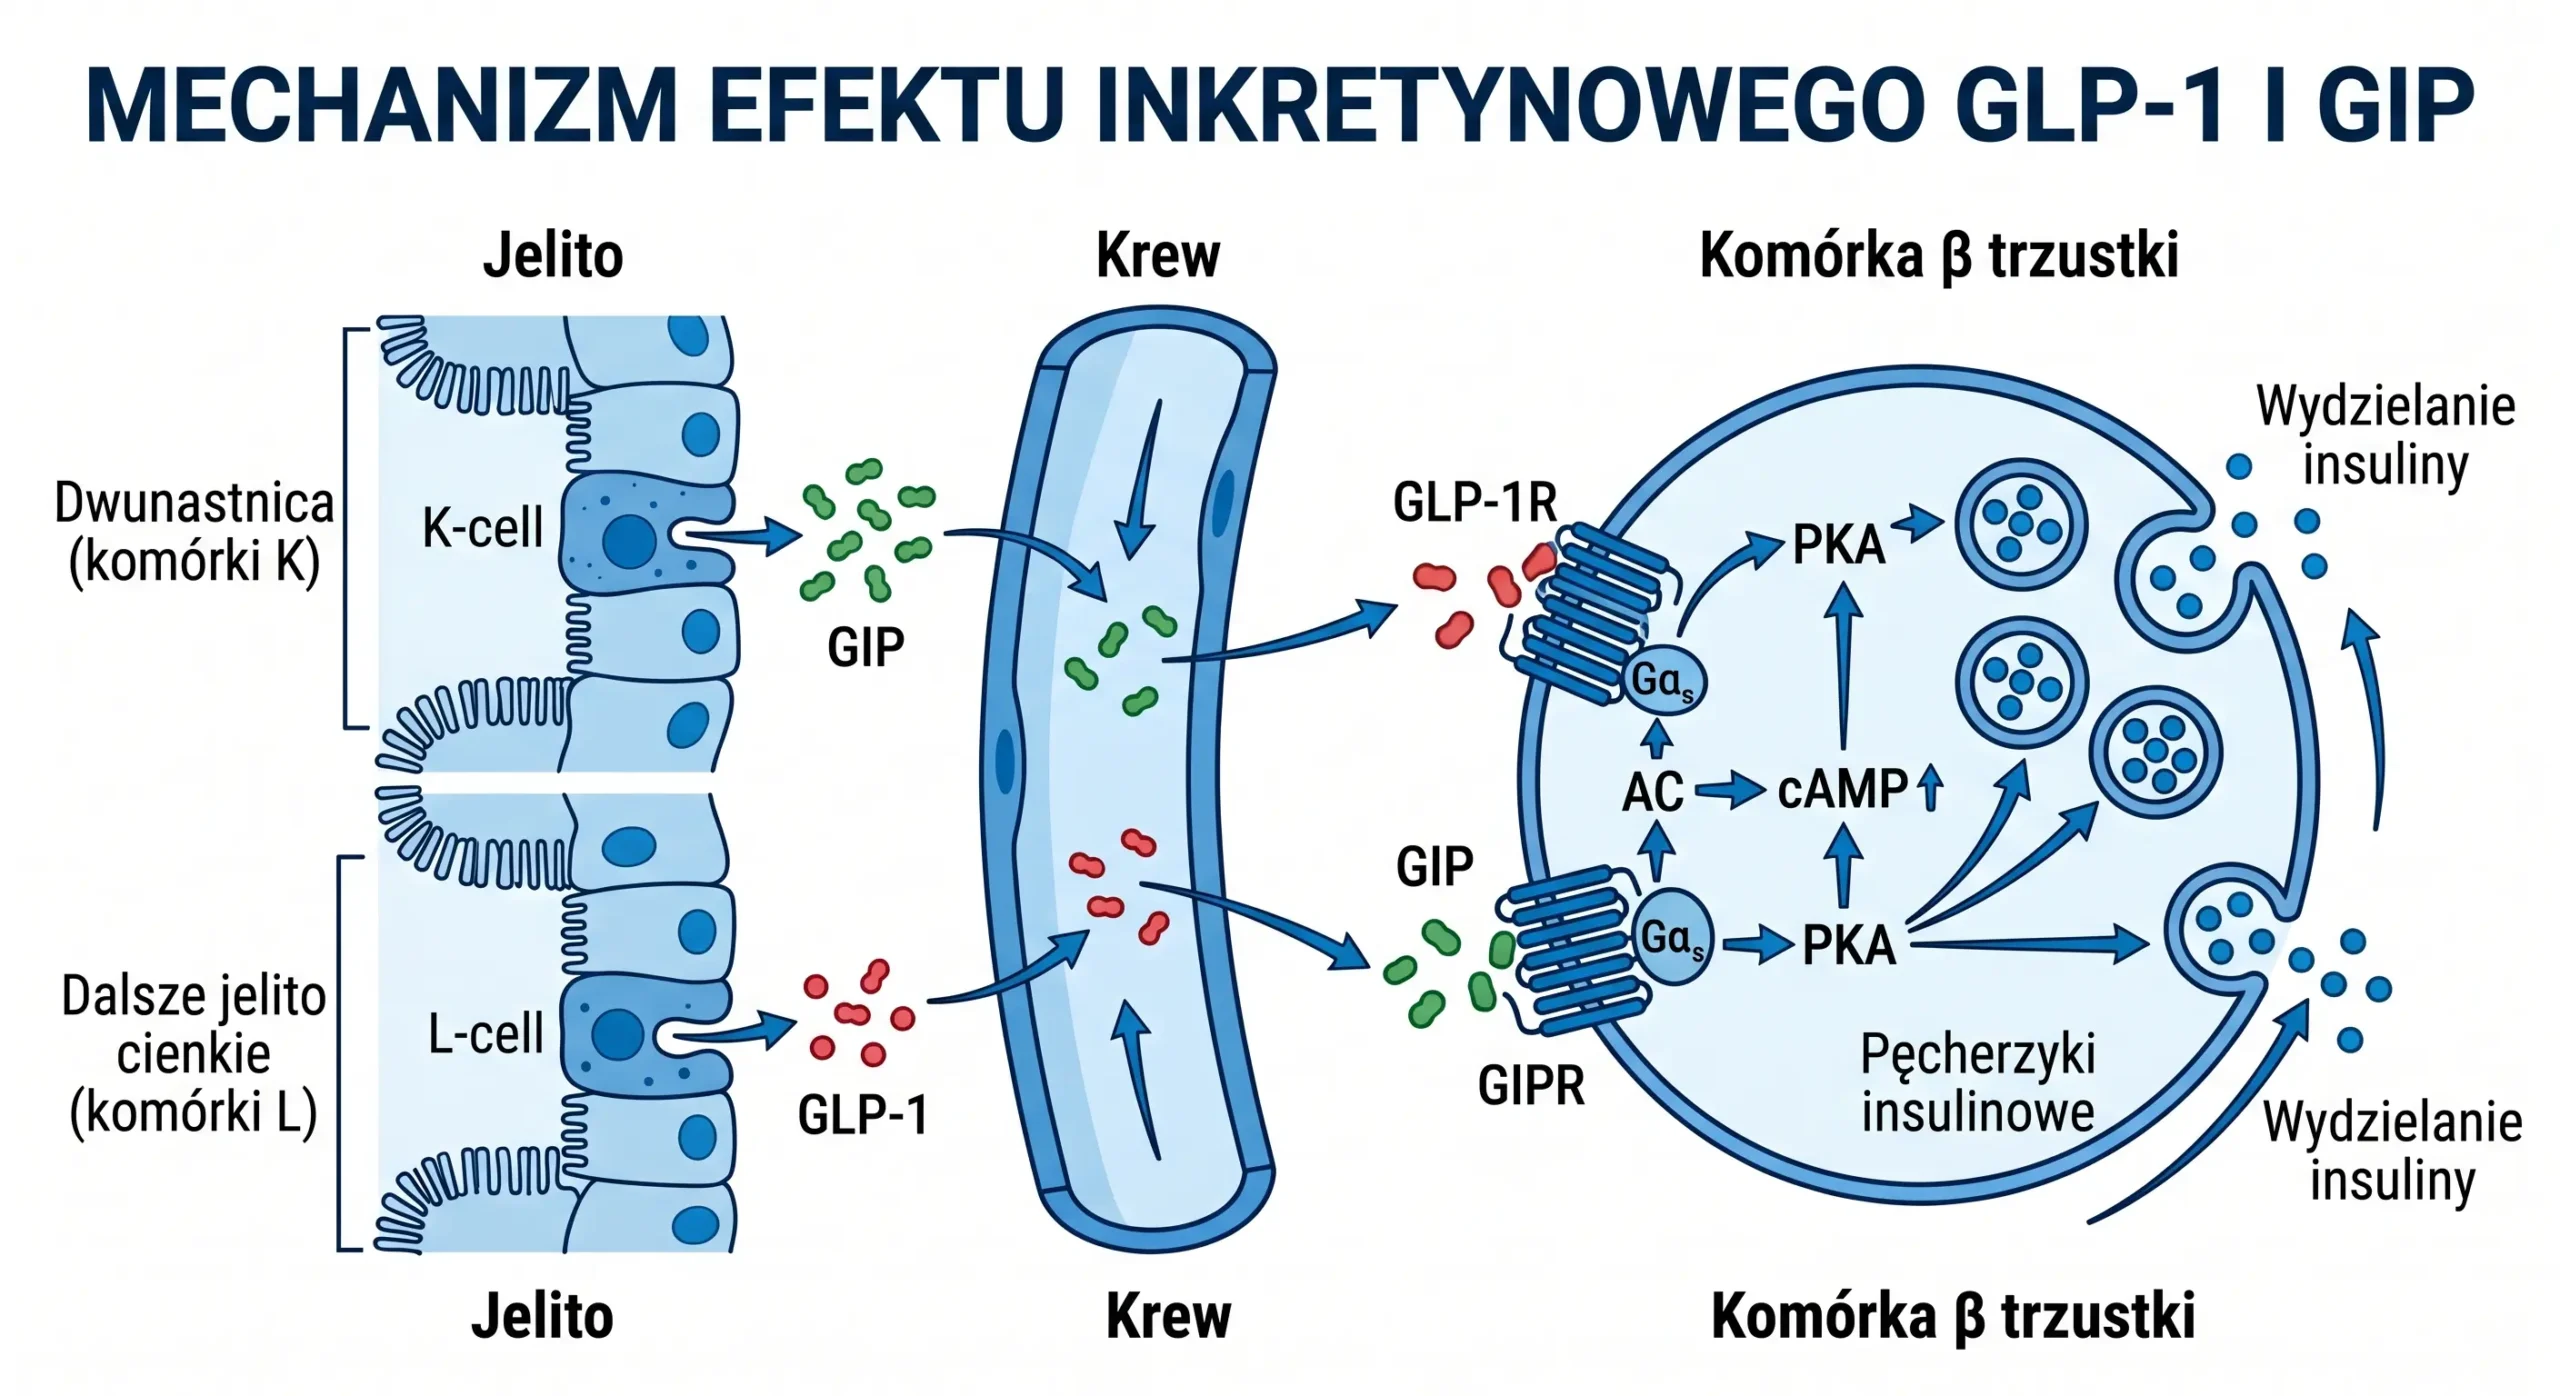
Kluczowe informacje
- Receptory GLP-1R i GIPR są receptorami sprzężonymi z białkiem G klasy B, aktywowanymi przez peptydy inkretynowe i różniącymi się kinetyka wiązania oraz ekspresją tkankową w hodowlach adipocytów
- Tirzepatide, podwójny agonista, wykazuje powinowactwo zbliżone do natywnego GIP dla GIPR, ale około pięciokrotnie słabsze dla GLP-1R, co determinuje niezbilansowany profil farmakologiczny
- Aktywacja GIPR w izolowanych adipocytach skutkuje akumulacją cAMP i stymulacją lipolizy, podczas gdy GLP-1R kontroluje głównie proliferację i różnicowanie preadipocytów
- Dual agonists działają jako częściowi efektory dla rekrutacji białka G i internalizacji receptora przy pełnej aktywności produkcji cAMP, co sugeruje zjawisko biased agonism w komórkowych systemach eksperymentalnych
Streszczenie
Niniejszy artykuł przedstawia analizę molekularnych mechanizmów aktywacji receptorów GLP-1R oraz GIPR w komórkowych modelach metabolicznych, ze szczególnym uwzględnieniem kinetyki wiązania, sygnalizacji wewnątrzkomórkowej i roli podwójnych agonistów w badaniach in vitro. Omówiono dane z eksperymentów prowadzonych na hodowlach adipocytów oraz linii komórkowych z nadekspresją receptorów, prezentując zróżnicowaną ekspresję tkankową, dynamikę asocjacji i dysocjacji ligandów oraz różnice w aktywacji ścieżek cAMP/PKA między GLP-1R a GIPR.
1. Wprowadzenie – receptory inkretynowe w modelach komórkowych
Receptory inkretynowe GLP-1R i GIPR stanowią kluczowe obiekty badań w kontekście metabolizmu komórkowego. Oba receptory są wyrażane w różnych tkankach, w tym w komórkach beta trzustki, układzie nerwowym oraz tkance tłuszczowej. W hodowlach komórkowych adipocytów i preadipocytów receptory te są wykorzystywane jako modele do analizy odpowiedzi metabolicznych na peptydy inkretynowe oraz ich analogi syntetyczne.
Badania in vitro prowadzone w liniach komórkowych z nadekspresją GLP-1R lub GIPR (np. HEK-293, INS-1832/3) umożliwiają precyzyjną analizę kinetyki wiązania, transdukcji sygnału oraz efektów funkcjonalnych aktywacji receptorowej. W szczególności modele te pozwalają na określenie parametrów farmakologicznych, takich jak stała dysocjacji (Kd), maksymalna odpowiedź (Emax) oraz potencja (EC50), które są fundamentalne dla charakteryzacji nowych związków peptydowych.
Ekspresja GLP-1R i GIPR w adipocytach różni się znacząco. Dane z izolacji frakcji komórkowych wskazują, że GIPR jest obecny zarówno w dojrzałych adipocytach, jak i w komórkach frakcji naczyniowo-zrębowej (SVF), podczas gdy ekspresja GLP-1R w dojrzałych adipocytach jest ograniczona lub nieobecna. Ten wzorzec ekspresji sugeruje, że efekty metaboliczne GLP-1 w tkance tłuszczowej są mediowane głównie przez działanie na preadipocyty, podczas gdy GIP bezpośrednio moduluje funkcje dojrzałych adipocytów.
2. Ekspresja receptorów GLP-1R i GIPR w tkankach metabolicznych
Receptor GLP-1R jest szeroko ekspresjonowany w komórkach beta trzustki, gdzie mediuje główny efekt insulinotropowy GLP-1. W tkance tłuszczowej ekspresja GLP-1R jest wykrywana przede wszystkim w preadipocytach oraz komórkach frakcji naczyniowo-zrębowej. Badania prowadzone na mysich i ludzkich izolowanych adipocytach wykazały brak lub minimalną ekspresję GLP-1R w dojrzałych komórkach tłuszczowych, co sugeruje, że bezpośredni wpływ GLP-1 na dojrzałe adipocyty jest ograniczony.
W przeciwieństwie do GLP-1R, receptor GIPR jest obecny zarówno w frakcji SVF, jak i w dojrzałych adipocytach, co potwierdzono w izolowanych hodowlach ludzkich i mysich komórek tłuszczowych. Aktywacja GIPR w dojrzałych adipocytach prowadzi do funkcjonalnej odpowiedzi, w tym do akumulacji cAMP oraz stymulacji lipolizy. Te różnice w ekspresji tkankowej mają fundamentalne znaczenie dla interpretacji wyników badań nad efektami metabolicznymi dual agonists oraz dla projektowania protokołów badawczych w hodowlach komórkowych.
| Typ komórki/tkanki | Ekspresja GLP-1R | Ekspresja GIPR | Główny efekt funkcjonalny |
|---|---|---|---|
| Komórki beta trzustki | +++ | +++ | Sekrecja insuliny, proliferacja, antyapoptoza |
| Preadipocyty (SVF) | ++ | ++ | Proliferacja, różnicowanie adipogenne |
| Dojrzałe adipocyty | -/+ | ++ | Lipoliza, lipogeneza, ekspresja LPL |
| Neurony ośrodkowe | ++ | + | Anoreksja, regulacja sytości |
| Linie komórkowe HEK-293 (transfekowane) | +++ | +++ | Model farmakologiczny – produkcja cAMP, wiązanie ligandów |
Legenda: +++ wysoka ekspresja, ++ umiarkowana, + niska, -/+ minimalna lub nieobecna. Dane oparte na badaniach RT-PCR i immunofluorescencji w komórkach izolowanych oraz liniach komórkowych.
3. Kinetyka wiązania – parametry kon, koff i powinowactwo ligandów
Parametry kinetyczne wiązania są kluczowe dla zrozumienia farmakologii receptorowej. Stała szybkości asocjacji (kon) określa, jak szybko ligand wiąże się z receptorem, natomiast stała szybkości dysocjacji (koff) opisuje szybkość uwalniania liganda z kompleksu receptor-ligand. Iloraz koff/kon definiuje stałą dysocjacji równowagowej (Kd), będącą miarą powinowactwa liganda do receptora. Niska wartość Kd oznacza wysokie powinowactwo.
Badania kinetyczne prowadzone w systemach bezkomórkowych z użyciem znakowanych radioaktywnie tracerów (np. 125I-GLP-1, 125I-GIP) oraz w żywych komórkach z zastosowaniem technologii SNAP-tag lub powierzchniowego rezonansu plazmonowego wykazały istotne różnice między natywnyymi inkretynami a ich pochodnymi syntetycznymi. Natywny GLP-1 charakteryzuje się wysokim powinowactwem do GLP-1R, podczas gdy natywny GIP wykazuje porównywalne powinowactwo do GIPR.
Tirzepatyd, będący podwójnym agonistą receptorów GLP-1R i GIPR, wykazuje niezbilansowany profil kinetyczny. W systemach komórkowych pozbawionych albuminy wykazano, że tirzepatyde ma powinowactwo do GIPR porównywalne z natywnym GIP, ale wiąże się z GLP-1R z około pięciokrotnie słabszym powinowactwem niż natywny GLP-1. Modyfikacja lipidowa w strukturze tirzepatydu (łańcuch acylowy C20) przyczynia się do wiązania z albuminą osocza i wydłużenia okresu półtrwania in vivo, ale w systemach bezalbuminowych wpływa na kinetykę wiązania receptorowego.
Pomiary konkurencyjnej kinetyki wiązania w komórkach HEK293-SNAP-GLP-1R pozwoliły na bezpośrednie porównanie parametrów kon i koff dla tirzepatydu oraz innych dual agonists. Wykazano, że tirzepatyde charakteryzuje się pośrednimi wartościami kon i koff w stosunku do mono-agonistów, co skutkuje umiarkowanym czasem retencji receptorowej przy obu typach receptorów. Ten profil kinetyczny może przyczyniać się do zrównoważonej aktywacji obu ścieżek receptorowych w warunkach in vitro.
4. Sygnalizacja wewnątrzkomórkowa: kaskada cAMP/PKA
Aktywacja GLP-1R i GIPR prowadzi do sprzężenia receptora z heterotrimetryczną podjednostką białka G typu Gαs. Gαs aktywuje cyklazę adenylową (AC), która katalizuje syntezę cAMP z ATP. cAMP działa jako drugi przekaźnik, aktywując co najmniej dwie główne ścieżki efektorowe: kinazę białkową A (PKA) oraz czynniki wymiany nukleotydu guaninowego regulowane przez cAMP z rodziny Epac (Exchange Protein directly Activated by cAMP).
W komórkach beta trzustki aktywacja PKA prowadzi do fosforylacji kanałów wapniowych typu L oraz innych białek związanych z egzocytozą, co wzmacnia sekrecję insuliny zależną od stężenia glukozy. W adipocytach i preadipocytach sygnalizacja cAMP/PKA reguluje ekspresję genów związanych z adipogenezą, lipolizą oraz metabolizmem glukozy. Dodatkowo, aktywacja Epac może prowadzić do mobilizacji wapnia ze zbiorników wewnątrzkomórkowych oraz modulacji aktywności małych białek G z rodziny Rap.
Badania prowadzone na izolowanych mysich i ludzkich adipocytach wykazały, że traktowanie GIP skutkuje szybką akumulacją cAMP oraz stymulacją lipolizy mierzonej uwolnieniem kwasów tłuszczowych i glicerolu do medium hodowlanego. Efekt ten jest zależny od aktywności cyklazy adenylowej i jest blokowany przez inhibitory AC. W obecności insuliny GIP indukuje fosforylację białka CREB (cAMP Response Element Binding Protein) na serynie 133 oraz translokację kofaktora TORC2 do jądra komórkowego, co prowadzi do transaktywacji genu lipazy lipoproteinowej (LPL) i wzmożonej lipogenezy.
W przypadku aktywacji GLP-1R w preadipocytach, sygnalizacja cAMP/PKA prowadzi do aktywacji kinaz ERK, PKC oraz AKT, które regulują proliferację, różnicowanie adipogenne oraz apoptozę. Badania na liniach komórkowych preadipocytów mysich (np. 3T3-L1) wykazały, że supresja ekspresji GLP-1R redukuje proliferację oraz różnicowanie, jednocześnie indukując apoptozę, co potwierdza kluczową rolę tego receptora w adipogennym rozwoju komórek prekursorowych.
| Receptor | Sprzężenie z białkiem G | Produkcja cAMP (EC50, pM) | Główna ścieżka efektorowa | Efekt w adipocytach |
|---|---|---|---|---|
| GLP-1R | Gαs | ~10–50 | PKA, Epac | Proliferacja preadipocytów, różnicowanie |
| GIPR | Gαs | ~20–100 | PKA, CREB/TORC2 | Lipoliza, lipogeneza (ekspresja LPL) |
| GLP-1R (tirzepatyde) | Gαs | ~50–200 | PKA, Epac (partial) | Modulacja adipogenezy (pośrednia) |
| GIPR (tirzepatyde) | Gαs | ~20–100 | PKA, CREB/TORC2 | Lipoliza, lipogeneza (jak GIP) |
Legenda: EC50 — stężenie liganda wywołujące 50% maksymalnej odpowiedzi; wartości orientacyjne z badań w systemach komórkowych z niską gęstością receptorów (low receptor density assays).
5. Farmakologia dual agonists – tirzepatide i jego pochodne
Tirzepatyde jest pierwszym klinicznie zatwierdzonym dual agonistą GLP-1R/GIPR. Został zaprojektowany poprzez inżynierię struktury peptydu GIP z wprowadzeniem aktywności względem GLP-1R. Cząsteczka tirzepatydu zawiera sekwencję aminokwasową wykazującą homologię zarówno do GIP, jak i GLP-1, z kluczowymi modyfikacjami strukturalnymi, w tym wprowadzeniem nienaturalnego aminokwasu aminoizomaślanu (AIB) oraz przyłączeniem łańcucha acylowego C20 za pośrednictwem linkera, co zapewnia wydłużenie czasu półtrwania poprzez wiązanie z albuminą osocza.
W badaniach farmakologicznych in vitro wykazano, że tirzepatyde jest niezbilansowanym dual agonistą, faworyzującym aktywność GIPR nad GLP-1R. W testach wiązania kompetycyjnego tirzepatyde wykazuje powinowactwo do GIPR porównywalne z natywnym GIP, ale wiąże się z GLP-1R z około pięciokrotnie słabszym powinowactwem niż natywny GLP-1. Pomimo słabszego wiązania, tirzepatyde zachowuje pełną aktywność agonistyczną dla produkcji cAMP przy obu receptorach, co oznacza, że maksymalna odpowiedź komórkowa (Emax) jest zachowana, mimo przesunięcia krzywej dawka-odpowiedź w kierunku wyższych stężeń.
Modyfikacja lipidowa w strukturze tirzepatydu odgrywa kluczową rolę w jego farmakologii. Usunięcie łańcucha acylowego prowadzi do zwiększenia powinowactwa do obu receptorów oraz zwiększenia potencji w testach produkcji cAMP, co wskazuje, że lipid obniża wewnętrzną aktywność peptydu, ale w kontekście in vivo jest niezbędny do osiągnięcia długiego czasu półtrwania. Ten kompromis między aktywnością wewnętrzną a farmakokinetyka jest charakterystyczną cechą projektowania peptydów terapeutycznych nowej generacji.
Inne dual agonists, takie jak HISHS-2001 oraz MAR709, różnią się od tirzepatydu pod względem kinetyki wiązania, biasu sygnalizacyjnego oraz profili internalizacji receptora. HISHS-2001 wykazuje zwiększone powinowactwo do GLP-1R oraz tendencję do zmniejszonej internalizacji i recyklingu receptora w porównaniu z tirzepatidem. Dodatkowo, HISHS-2001 wykazuje większy bias w kierunku produkcji cAMP kosztem rekrutacji β-arestyny 2, co może wpływać na czas trwania sygnalizacji receptorowej. Te różnice podkreślają możliwość dostrajania farmakologii dual agonists poprzez modyfikacje strukturalne w celu osiągnięcia optymalnych profili sygnalizacyjnych w badaniach komórkowych.
6. Internalizacja receptorów i trafficking wewnątrzkomórkowy
Po aktywacji liganda, receptory GLP-1R i GIPR ulegają internalizacji poprzez mechanizmy zależne od klatryny. Proces ten jest mediowany przez β-arestyny, które wiążą się z fosforylowanymi domenami wewnątrzkomórkowymi receptorów i rekrutują kompleks adaptorowy AP-2 oraz klaturynę, prowadząc do formowania pęcherzyków powleczonych. Zinternalizowane receptory mogą następnie być kierowane do endosomów wczesnych (Rab5+), późnych (Rab7+) lub endosomów recyklingowych (Rab11+).
Badania z użyciem żywych komórek oraz mikroskopii konfokalnej wykazały, że dual agonists, takie jak tirzepatyde oraz MAR709, działają jako częściowe efektory (partial agonists) w odniesieniu do internalizacji receptora GLP-1R oraz rekrutacji β-arestyny, mimo zachowania pełnej aktywności w produkcji cAMP. To zjawisko, określane jako biased agonism, sugeruje, że dual agonists preferują aktywację kaskady Gαs/cAMP kosztem ścieżek zależnych od β-arestyny.
W przypadku GIPR dual agonists wykazują ograniczoną internalizację receptora w porównaniu z natywnym GIP, co może przedłużać sygnalizację na powierzchni komórki. W badaniach przestrzenno-czasowych na komórkach HEK-293 wykazano, że tirzepatyde indukuje mniejsze włączanie GIPR do endosomów recyklingowych Rab11+ w porównaniu z GIP, co może wpływać na dostępność receptora na powierzchni komórki w kolejnych cyklach aktywacji.
Interesujące jest również, że zinternalizowane receptory GLP-1R mogą kontynuować sygnalizację z endosomów wczesnych. W komórkach beta trzustki wykazano, że endosomy zawierające aktywny GLP-1R tworzą kontakty ze strukturami retikulum endoplazmatycznego (ER) oraz mitochondriami, gdzie rekrutują białko SPHKAP (A-kinase anchoring protein) oraz generują pule cAMP zlokalizowane przestrzennie w miejscach kontaktu międzyorganelowego (ER-mitochondria MCS). Ta przestrzenna organizacja sygnalizacji cAMP może mieć znaczenie dla specyficznych efektów metabolicznych aktywacji receptorów inkretynowych.
7. Zastosowania badawcze w hodowlach komórkowych
Peptydy syntetyczne, takie jak GLP-1, GIP oraz dual agonists, są szeroko wykorzystywane w badaniach komórkowych do analizy mechanizmów aktywacji receptorów oraz modulacji ścieżek metabolicznych. W liniach komórkowych z nadekspresją receptorów (np. HEK-293-GLP-1R, HEK-293-GIPR) przeprowadza się testy wiązania kompetycyjnego, pomiary produkcji cAMP, analizę rekrutacji białek G oraz β-arestyny, a także badania kinetyki internalizacji i recyklingu receptorów.
W izolowanych hodowlach adipocytów ludzkich i mysich peptydy inkretynowe są stosowane do badania efektów metabolicznych, takich jak stymulacja lipolizy, regulacja ekspresji genu lipazy lipoproteinowej (LPL), wpływ na proliferację i różnicowanie preadipocytów oraz modulacja fosforylacji białek sygnalizacyjnych, w tym CREB, AKT, ERK i PKC. Hodowle te pozwalają na ocenę bezpośrednich efektów aktywacji receptorów w fizjologicznie istotnych typach komórek.
W badaniach strukturalno-funkcjonalnych stosuje się mutagenezę ukierunkowaną receptorów, aby zidentyfikować kluczowe reszty aminokwasowe odpowiedzialne za wiązanie liganda oraz aktywację receptora. Porównanie aktywności wariantów receptorowych w odpowiedzi na natywne inkretyny oraz dual agonists dostarcza informacji o determinantach powinowactwa i selektywności ligandów. Badania te są podstawą racjonalnego projektowania nowych peptydów o zoptymalizowanych profilach farmakologicznych.
W kontekście dual agonists kluczowe pytania badawcze obejmują określenie, czy jednoczesna aktywacja GLP-1R i GIPR prowadzi do efektów synergistycznych, addytywnych czy antagonistycznych w zakresie produkcji cAMP, fosforylacji białek efektorowych oraz regulacji ekspresji genów. Eksperymenty z selektywnym blokowaniem jednego z receptorów (np. za pomocą przeciwciał neutralizujących lub knock-downu siRNA) pozwalają na rozdzielenie wkładu poszczególnych receptorów do obserwowanych efektów komórkowych.
Wszystkie opisane zastosowania mają charakter wyłącznie naukowo-badawczy. Peptydy syntetyczne oferowane przez NanoPept nie są przeznaczone do diagnostyki, leczenia ani zapobiegania chorobom u ludzi i powinny być wykorzystywane wyłącznie w kontrolowanych warunkach laboratoryjnych zgodnie z odpowiednimi protokołami badawczymi.
8. Podsumowanie
Kinetyka aktywacji receptorów GLP-1R oraz GIPR w komórkowych modelach metabolicznych jest złożonym procesem, który obejmuje wiązanie liganda, aktywację białka G, produkcję cAMP, internalizację receptora oraz dalszą sygnalizację wewnątrzkomórkową z endosomów. Różnice w ekspresji tkankowej obu receptorów, ich kinetyce wiązania oraz preferencjach sygnalizacyjnych determinują specyficzne efekty metaboliczne aktywacji inkretynowej w różnych typach komórek.
Dual agonists, takie jak tirzepatyd, reprezentują zaawansowane narzędzia farmakologiczne, które pozwalają na jednoczesną modulację obu receptorów inkretynowych. Niezbilansowany profil farmakologiczny tirzepatydu – preferujący aktywację GIPR nad GLP-1R – oraz zjawisko biased agonism w zakresie produkcji cAMP versus rekrutacji β-arestyny, wskazują na możliwość dostrajania efektów receptorowych poprzez modyfikacje strukturalne peptydów.
Badania w hodowlach komórkowych adipocytów dostarczają fundamentalnych informacji o mechanizmach regulacji metabolizmu lipidów oraz węglowodanów przez peptydy inkretynowe. Zrozumienie kinetyki receptorowej, ścieżek sygnalizacyjnych oraz przestrzenno-czasowej organizacji sygnału cAMP jest kluczowe dla racjonalnego projektowania nowych peptydów oraz interpretacji wyników badań in vitro. Dalsze badania w tym obszarze przyczynią się do lepszego zrozumienia molekularnych podstaw działania dual agonists oraz ich potencjału jako narzędzi w badaniach metabolicznych.
Uwaga: Wszystkie informacje zawarte w niniejszym artykule mają charakter wyłącznie naukowo-edukacyjny i odnoszą się do badań prowadzonych w warunkach laboratoryjnych in vitro. Peptydy syntetyczne oferowane przez NanoPept nie są przeznaczone do diagnostyki, leczenia ani zapobiegania chorobom u ludzi.
Bibliografia / Literatura Referencyjna:
- NCBI PubMed (Schlein et al., 2012): Regulation of Adipocyte Formation by GLP-1/GLP-1R Signaling — analiza aktywacji GLP-1R w preadipocytach mysich oraz sygnalizacji PKA, ERK, PKC i AKT w kontekście adipogenezy. [Dostęp do publikacji]
- JCI Insight (Willard et al., 2020): Tirzepatide is an imbalanced and biased dual GIP and GLP-1 receptor agonist — charakterystyka farmakologiczna tirzepatydu w testach wiązania kompetycyjnego i produkcji cAMP. [Dostęp do publikacji]
- PNAS (Killion et al., 2022): Structural determinants of dual incretin receptor agonism by tirzepatide — badania strukturalne z wykorzystaniem krystalografii i mutagenezy ukierunkowanej receptorów GLP-1R i GIPR. [Dostęp do publikacji]
- Cell Metabolism (Marso et al., 2024): Tirzepatide modulates the regulation of adipocyte nutrient metabolism through long-acting activation of the GIP receptor — ekspresja GIPR w izolowanych adipocytach ludzkich i mysich, akumulacja cAMP oraz stymulacja lipolizy. [Dostęp do publikacji]
- NCBI PMC (Timper et al., 2010): GIP increases human adipocyte LPL expression through CREB and TORC2-mediated trans-activation of the LPL gene — mechanizmy fosforylacji CREB oraz translokacji TORC2 w regulacji ekspresji lipazy lipoproteinowej w adipocytach. [Dostęp do publikacji]
- NCBI PMC (Samms et al., 2021): Spatiotemporal GLP-1 and GIP receptor signaling and trafficking/recycling dynamics induced by selected receptor mono- and dual-agonists — analiza internalizacji receptorów, rekrutacji β-arestyny oraz trafficking w endosomach Rab5+, Rab7+ i Rab11+. [Dostęp do publikacji]
- NCBI PMC (Yabe et al., 2014): Glucose‐dependent insulinotropic polypeptide signaling in pancreatic β‐cells and adipocytes — rola sygnalizacji cAMP/PKA i CREB w efektach antyapoptotycznych oraz metabolicznych GIPR. [Dostęp do publikacji]
- NCBI PMC (Zhao et al., 2020): Chronic glucose-dependent insulinotropic polypeptide receptor (GIPR) agonism desensitizes adipocyte GIPR activity — badania nad desensytyzacją receptora GIPR w izolowanych adipocytach po długotrwałej ekspozycji na agonistów. [Dostęp do publikacji]